神经元的不应期及其在神经科学和电刺激研究中的应用

用BrainPy实战:从LIF到QIF神经元模型的5个关键参数调优技巧 本文通过BrainPy实战,详细解析了LIF和QIF神经元模型的5个核心参数调优技巧。重点探讨了膜时间常数、阈值电位、重置电位、不应期以及QIF特有的非线性参数对模型动力学行为的影响,并提供代码示例帮助解决神经元不发放、频率异常等常见问题,旨在提升计算神经科学模拟的准确性与效率。 阅读详情

不应期(Refractory Period):核心机制、分类与科研应用全解析

不应期是动作电位产生后,神经元(或可兴奋细胞)在一段时间内对新刺激的反应能力下降或丧失的生理现象,本质是电压门控离子通道(尤其是Na⁺通道)的状态转换(失活→恢复)导致的兴奋性暂时改变。这一特性直接限制神经元的动作电位发放频率、调控神经回路信号传递,也是经颅电刺激(tES)、深部脑刺激(DBS)等技术参数设计的关键依据,与视皮层电刺激、轴突模型研究高度相关。

一、核心定义与分类(按兴奋性恢复程度划分)

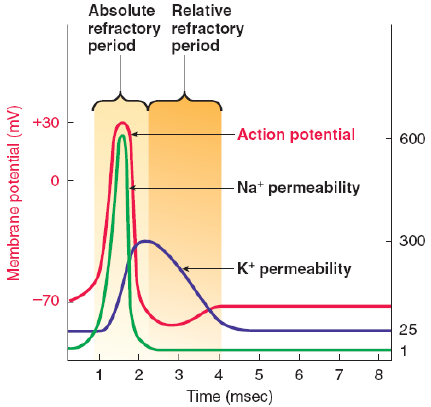
根据神经元对刺激的响应能力,不应期分为绝对不应期和相对不应期,两者衔接出现,总时长约1~5毫秒(ms),具体时长因神经元类型(如视皮层锥体神经元、中间神经元)、轴突特性(髓鞘化程度)而异。

类型时间范围(动作电位后)核心生理机制对刺激的反应关键通道状态
绝对不应期(Absolute Refractory Period, ARP)0.5~2 ms(去极化峰值→复极化中期)电压门控Na⁺通道完全失活(无法被激活),即使强刺激也无法触发新的动作电位完全无反应(无论刺激强度多大,均不产生动作电位)Na⁺通道:失活态( inactivation gate 关闭);K⁺通道:激活态(持续开放)
相对不应期(Relative Refractory Period, RRP)2~5 ms(复极化中期→超极化结束)Na⁺通道逐渐从失活态恢复为静息态(可被激活),但膜电位处于超极化状态(比静息电位更负),需更强刺激才能达到阈电位仅对超阈值刺激(强度远超阈电位)有反应,动作电位振幅可能略低、时程略长Na⁺通道:部分恢复为静息态;K⁺通道:逐渐关闭(仍有少量K⁺外流);膜电位:-75~-80 mV(超极化)

补充:超常期(Supranormal Period)

部分神经元在相对不应期后会出现短暂的“超常期”(约5~10 ms),此时膜电位接近阈电位,低于阈电位的弱刺激即可触发动作电位(兴奋性高于静息状态),随后恢复正常兴奋性。这一现象在视皮层神经元的高频信号传递中可能起到微调作用,但实际应用中(如tES参数设计)影响较小。
在这里插入图片描述

二、核心机制:离子通道的状态转换

不应期的本质是电压门控Na⁺通道的“失活-恢复”周期,结合动作电位的离子机制可清晰理解:

  1. 动作电位去极化阶段:Na⁺通道快速激活(开放),Na⁺内流导致膜电位飙升;
  2. 去极化峰值后:Na⁺通道迅速进入失活态( inactivation gate 关闭,与“关闭态”不同——失活态需等待膜电位复极化才能恢复,关闭态可直接被刺激激活);
  3. 复极化阶段:K⁺通道持续开放,K⁺外流使膜电位回落,此时Na⁺通道保持失活态(绝对不应期);
  4. 超极化阶段:K⁺通道逐渐关闭,膜电位从超极化回归静息电位,Na⁺通道逐步从失活态恢复为静息态(相对不应期);
  5. 恢复后:Na⁺通道完全恢复静息态,神经元可被正常阈刺激触发动作电位。

关键结论:Na⁺通道的失活态持续时间决定绝对不应期长度,Na⁺通道的恢复速度和超极化程度决定相对不应期长度。

三、影响不应期的关键因素(适配科研与仿真参数)

1. 神经元/轴突类型

  • 视皮层锥体神经元(投射神经元):绝对不应期约1~2 ms,相对不应期约2~3 ms,总时长3~5 ms(适合中等频率信号传递,发放频率上限约200 Hz);
  • 视皮层中间神经元(抑制性神经元):绝对不应期短(0.5~1 ms),相对不应期约1~2 ms,总时长1.5~3 ms(发放频率上限可达500~1000 Hz,参与高频神经回路调控);
  • 髓鞘化轴突:不应期略短于无髓鞘轴突(髓鞘加速膜电位复极化,促进Na⁺通道恢复)。

2. 环境与生理条件

  • 温度:体温升高(如37℃→40℃)加速Na⁺通道恢复,不应期缩短(每升高10℃,不应期约缩短30%);低温(如25℃)则延长不应期(仿真时需固定37℃人体标准温度);
  • 离子浓度:细胞外Na⁺浓度升高→Na⁺通道恢复速度加快→不应期缩短;细胞外K⁺浓度升高→静息电位去极化→相对不应期缩短(神经元兴奋性升高);
  • pH值:酸性环境(pH<7.0)抑制Na⁺通道恢复→不应期延长;碱性环境(pH>7.8)加速恢复→不应期缩短。

3. 药物/神经调控干预

  • 钠通道阻滞剂(如河豚毒素TTX):延长绝对不应期(甚至完全阻断Na⁺通道,消除动作电位);
  • 阳极tES:使膜电位去极化,缩短相对不应期(神经元兴奋性升高);
  • 阴极tES:使膜电位超极化,延长相对不应期(神经元兴奋性降低)。

四、在神经科学+电刺激研究中的核心应用

1. tES/DBS参数设计的核心约束

不应期直接限制神经元的最大发放频率(理论上限=1/绝对不应期,如绝对不应期1 ms→最大频率1000 Hz,但实际生理条件下因能量限制,视皮层神经元最大发放频率约200~500 Hz),因此tES参数设计需遵循:

  • 低频tES(<10 Hz,如tDCS):刺激间隔(100 ms)远长于不应期(3~5 ms),神经元有足够时间恢复兴奋性,可有效触发动作电位;
  • 中频tES(10~100 Hz,如tACS):刺激间隔(10~100 ms)接近不应期,需精准控制刺激强度(避免叠加在绝对不应期),否则会导致动作电位“阻滞”;
  • 高频tES(>100 Hz,如rTMS):刺激间隔(<10 ms)短于不应期,神经元无法及时恢复,会被“抑制”(无法产生动作电位),适用于调控过度兴奋的神经回路(如癫痫)。

2. 视觉皮层信息编码的调控

视皮层神经元通过动作电位的发放频率编码视觉信息(如强光→高频发放,弱光→低频发放),不应期是频率编码的“天然限制器”:

  • 中央视野对应的V1区神经元:不应期较短(约3 ms),最大发放频率约300 Hz,可编码精细视觉信息(如高空间频率光栅);
  • 周边视野对应的V1区神经元:不应期较长(约5 ms),最大发放频率约200 Hz,编码粗略视觉信息(如运动方向);
  • 研究启示:通过VEP记录群体神经元的发放同步性(如P100波的时程),可间接评估不应期长度——P100波宽增加可能提示不应期延长(如tES抑制后)。

3. 轴突区室模型的关键参数

构建视皮层轴突模型时,需将不应期参数融入离子通道动力学,确保仿真结果贴近生理实际:

  • Hodgkin-Huxley(HH)模型:通过设置Na⁺通道的失活时间常数(τₕ)模拟绝对不应期(τₕ≈1 ms),复极化时间常数模拟相对不应期;
  • LIF模型(简化模型):直接设置“不应期参数”(如refractory_period=3 ms),期间神经元不响应任何刺激;
  • 髓鞘化轴突模型:郎飞氏结处Na⁺通道密度高,恢复速度快,不应期短于结间段,需分区设置不应期参数(如郎飞氏结不应期1 ms,结间段2 ms)。

4. 神经损伤与修复研究

  • 视皮层轴突损伤(如髓鞘脱落):Na⁺通道分布紊乱→不应期延长→动作电位发放频率降低→VEP的P100振幅降低、潜伏期延长;
  • 干预评估:通过tES促进髓鞘再生后,可测量不应期缩短(如从5 ms→3 ms),同步观察VEP参数恢复,量化修复效果。

五、研究技术与测量方法

1. 实验测量技术

  • 膜片钳(Patch Clamp):金标准,直接记录单个神经元的动作电位,测量绝对/相对不应期(如给予系列刺激,记录能触发动作电位的最小刺激强度及时程);
  • 多电极阵列(MEA):同时记录多个神经元的不应期,分析神经回路中神经元的不应期同步性;
  • VEP(视觉诱发电位):间接评估群体神经元的不应期——通过改变刺激频率(如1~100 Hz闪光刺激),记录VEP振幅变化(当刺激频率超过神经元最大发放频率时,振幅显著下降,对应不应期约束)。

2. 仿真模型中的参数设置示例

  • 视皮层锥体神经元(HH模型):Na⁺通道失活时间常数τₕ=1 ms(绝对不应期1 ms),K⁺通道关闭时间常数τₖ=2 ms(相对不应期2 ms);
  • 髓鞘化轴突区室模型:郎飞氏结区不应期=1 ms,结旁段(FLUT)=1.5 ms,结间段(STIN)=2 ms。

六、总结

不应期是神经元的核心生理特性,由Na⁺通道的失活-恢复周期决定,分为绝对不应期(完全无反应)和相对不应期(仅对强刺激反应),总时长3~5 ms(视皮层神经元)。其核心价值在于:

  1. 限制神经元最大发放频率,避免过度兴奋;
  2. 调控神经回路信号传递的时序(如视觉信息的快速编码);
  3. 为tES/DBS参数设计提供关键约束(如频率、强度);
  4. 作为神经损伤/修复的量化指标(如髓鞘损伤→不应期延长)。
从零实现Hodgkin-Huxley模型:基于BrainPy的神经元动作电位仿真指南 本文提供了一份基于BrainPy框架从零实现Hodgkin-Huxley(HH)神经元模型的实战指南。通过将神经元膜电位和离子通道动力学转化为可执行的Python代码,详细讲解了模型构建、仿真与可视化过程,帮助读者深入理解动作电位产生的“全或无”定律、不应期等核心机制,是学习计算神经科学和生物物理仿真的理想入门教程。 阅读详情

相关推荐

从LIF到Izhikevich:5种脉冲神经元模型实战对比(附代码)

本文从工程实践角度对比了LIF、Izhikevich、Hodgkin-Huxley等五种主流脉冲神经元模型,通过代码示例和性能基准测试,分析了它们在生物可解释性、计算效率和脉冲模式丰富度上的差异,并提供了基于应用场景的清晰选型指南,帮助开发者在构建脉冲神经网络时做出明智决策。

weixin_29047919的博客 341

fly-brain代码深潜2:用PyTorch实现138K神经元循环网络(稀疏CSR权重+批量并行+代理梯度)

fly-brain 是一个基于果蝇全脑连接组(约 13.8 万神经元、500 万突触)的 LIF(Leaky Integrate-and-Fire,漏积分发放)神经仿真项目。本系列上一篇介绍了项目结构与 Brian2 基准后端,这一篇我们钻进 `code/run_pytorch.py`,拆解它如何用 PyTorch 搭建这个 138K 神经元的循环网络——重点看三个工程技巧:**稀疏 CSR 权重

gitblog_00002的博客 997

LIF模型实战指南:从理论推导到BrainPy实现

本文提供了LIF模型从理论到实践的完整指南。通过生动的比喻解释模型核心概念,详细推导了膜电位方程及其解析解,并利用BrainPy库逐步实现了LIF神经元。文章深入探讨了时间常数、不应期等关键参数的影响,并通过代码验证了频率-电流关系等理论特性,最后演示了如何构建动态响应及简单的兴奋性突触网络。

red88的博客 668

动作电位的产生与传导

动作电位是神经元和肌细胞等可兴奋细胞受刺激后膜电位的快速可逆波动,通过Na⁺/K⁺离子通道的有序开闭实现。它具有全或无、不衰减传导、不应期等特性,是神经信号传导的基础。动作电位受轴突结构、离子浓度和环境因素影响,在神经科学研究中应用广泛,如经颅电刺激、视觉信息编码和神经损伤修复研究。实验技术包括膜片钳和脑电图,仿真模型有Hodgkin-Huxley和LIF模型等。动作电位是连接电刺激与神经功能的关键,为神经调控技术提供重要理论支撑。

johnboat的专栏 2115

分数阶泄漏积分点火神经元模型Matlab仿真实现

神经元模型是计算神经科学的基础工具,分数阶微分方程通过引入非整数阶微分算子,能够更精确地描述神经元的亚阈值振荡等复杂电生理特性。相较于传统整数阶模型,分数阶泄漏积分点火(FLIF)模型在保持计算效率的同时,显著提升了生物真实性。该技术特别适用于模拟阿尔茨海默病等神经退行性疾病的异常放电模式,以及开发新一代神经形态芯片。本文详细介绍FLIF模型的Matlab实现方案,包含Grunwald-Letnikov数值解法、电生理指标计算和并行化参数扫描等工程实践技巧,为计算神经科学和类脑计算研究提供可直接复用的仿真框

weixin_31100517的博客 325

32、神经元雪崩的活动依赖模型:从理论到应用

本文介绍了一种基于自组织临界性(SOC)的神经网络模型,能够准确模拟神经元雪崩的自发活动特性。模型融合了动作电位发放、不应期和活动依赖的突触可塑性等关键神经元机制,再现了雪崩大小与持续时间的幂律分布及与脑电图一致的功率谱特征。该模型在学习任务中展现出普遍性动态规律,且在神经科学研究、人工智能算法优化和医学诊断等领域具有广泛应用前景。

dropout6artist的博客 67

【神经元动作电位】matlab实现电磁感应效应对神经元动作电位的随机性分析

本文探讨电磁感应效应对神经元动作电位随机性的影响。通过构建考虑电磁感应效应的Hodgkin-Huxley神经元模型,结合随机微分方程和噪声分析,模拟了电磁场变化对神经元电活动的调制作用。研究结果表明,电磁感应产生的感应电动势会叠加到神经元膜电位上,改变离子通道开放概率,进而影响动作电位的产生时程和兴奋性。MATLAB仿真代码实现了该模型,包含电磁场参数、随机噪声和离子通道动态特性。这项研究为理解电磁环境对神经活动的影响提供了新视角,对神经科学领域具有重要参考价值。

m0_53407570的博客 1164

33、神经科学与机器学习中的关键概念解析

本文深入探讨了神经科学与机器学习中的核心概念,涵盖动作电位的产生与传播机制、经典神经元模型(如Hodgkin-Huxley模型和整合-发放模型)、多种学习规则(包括Hebb规则及其变体)以及决策理论在神经网络中的应用。同时介绍了因果模型的基本原理,并通过表格和mermaid流程图直观展示了学习规则对比和动作电位产生过程,旨在为理解神经信息处理机制提供理论基础。

jenkins8butler的博客 57

【生物】电磁感应效应对神经元动作电位的随机分析(Matla代码实现)

本文旨在探讨电磁感应效应对神经元动作电位随机性的影响。通过构建考虑电磁感应效应的神经元动作电位数学模型,结合随机分析方法和统计工具,模拟了电磁感应效应下神经元动作电位的随机性,并分析了这种随机性对神经元信息传递的潜在影响。研究结果为理解电磁环境对神经元活动的影响提供了新的视角,对神经科学领域的相关研究具有重要参考价值。

weixin_46039719的博客 626

8、大神经网络中刺激驱动的无监督突触修剪

本博文介绍了一项关于大神经网络中刺激驱动的无监督突触修剪机制的研究。通过模拟局部连接的随机积分-放电单元网络,并应用基于STDP的生物启发规则,研究在不同刺激协议下细胞集合的形成及其连接拓扑的变化。研究发现,固定刺激协议能够显著影响强互连单元(SI-单元)的活动模式和连接结构,促进馈前汇聚模式的形成,而输入单元比例是影响修剪效果的关键因素。这项研究不仅有助于理解大脑发育中的突触修剪机制,也为人工智能领域神经网络的优化提供了新思路。

cherry的博客 84

40、临界状态下的网络:对刺激的响应机制

本文探讨了临界状态下神经网络对刺激的响应机制,结合理论模型与实验数据,揭示了网络在弱刺激时的信号放大能力与强刺激时的自调节特性。研究显示,临界状态下的网络具有非线性响应和最大动态范围,有助于高效处理跨数量级的感官输入。实验结果支持理论预测,包括感官系统中的幂律响应、耦合机制对动态范围的影响,以及大脑活动中长程相关性等标度特性。文章总结了当前研究成果,指出其在理解大脑信息处理及疾病机制中的重要意义,并展望了多尺度、动态变化和跨学科的未来研究方向。

dropout6artist的博客 55

手写Python实现LIF脉冲神经元:从膜电位积累到脉冲发放

传统深度学习依赖连续值函数逼近,而生物神经元的信号传递本质是离散脉冲。脉冲神经网络(SNN)通过模拟膜电位的积累、泄漏与阈值触发,以事件驱动方式处理时间信息,在能效和时序任务上展现出独特优势。LIF(Leaky Integrate-and-Fire)模型作为最经典的神经元模型,将生物学机制简化为可计算的微分方程,适合用Python进行单元级仿真。通过手写代码实现膜电位动态、脉冲发放与不应期恢复,不仅能直观理解神经元的动态响应,也为后续搭建SNN网络、结合替代梯度训练打下基础。文章完整记录了一个可观测的LIF

weixin_33851604的博客 324

多场耦合优化-主题084-神经科学与脑仿真

神经科学与脑仿真是连接生物学、物理学、数学和计算机科学的交叉领域,旨在通过计算模型理解和模拟神经系统的结构和功能。本主题系统介绍神经科学仿真的理论基础和方法体系,涵盖从单神经元到大规模神经网络的多个尺度。内容包括Hodgkin-Huxley神经元模型、脉冲神经网络、神经网络动力学、脑连接组学、认知建模等核心概念。通过Python仿真实现,展示神经元电活动、网络同步、信息处理等神经科学现象。本主题旨在为工程仿真领域提供神经科学仿真的理论基础和实践指导,帮助读者理解大脑的工作原理并探索类脑计算的新模式。神经科学

2401_87715305的博客 210

fly-brain的科学原理:如何从FlyWire连接组构建138K神经元/500万突触的果蝇全脑计算模型

🧬 fly-brain 是基于 FlyWire 连接组数据构建的**果蝇全脑计算模型**:138,639 个神经元、约 500 万个突触,全部还原为可运行的 LIF(leaky integrate-and-fire,漏积分发放)神经网络。你能"点亮"任意一组神经元,并观察信号如何在全脑中传播。本文将用通俗语言拆解它的科学原理:数据从哪来、神经元如何建模、大脑如何被"操控"、以及 6 种计算后端如

gitblog_00271的博客 893

神经元动作电位模拟与分析:integrate and fire 模型MATLAB源码

本文还有配套的精品资源,点击获取 简介:integrate and fire模型(IF模型)是神经科学中模拟神经元行为的基本模型。本MATLAB源码包提供了一个交互式平台,用于探索IF模型和动作电位的原理。用户可以设置神经元参数,观察其对动作电位产生和传播的影响。源码包含神经元模型创建、连接、输入刺激、输出记录和分析等模块。通过运行和修改代码,研究者和学生可以深入理解神经元...

weixin_30481539的博客 1363

掌握Izhikevich神经元模型与MATLAB仿真

在我们探讨神经元模型的世界之前,让我们先了解一下神经元模型在计算神经科学中扮演的角色。神经元模型作为计算机仿真的基础,它试图模拟真实世界中大脑神经元的行为。这些模型的设计和应用,对于我们理解大脑如何工作,以及如何构建出类脑的智能系统有着极其重要的意义。我们通常将神经元模型分为两大类:生物学上更为准确的生物物理模型和以计算效率优先的简化模型。生物物理模型力图接近真实神经元的物理和化学过程,而简化模型则专注于突触和神经元之间的信息交换模式。

weixin_28721743的博客 1016

从神经元到算法(生物学启发)

本文探讨了生物神经元与人工神经网络的演变关系。从生物神经元的结构与McCulloch-Pitts模型对比开始,分析了赫布法则与反向传播算法的关键突破。通过突触与权重矩阵的可视化比较,揭示了现代CNN、RNN等网络架构的生物学基础,如视觉皮层和注意力机制的启发。尽管当前AI在能量效率、样本学习等方面与生物智能仍有差距,但脉冲神经网络、神经形态计算等方向正在缩小这一差距。文章展现了80年来从生物结构到深度学习算法的跨学科发展历程,既是对自然的致敬,也指明了未来研究的可能方向。

m0_66884848的博客 953

LIF神经元模型详解与MATLAB实现完整源码

真实神经元的工作机制极其复杂:钠钾泵、电压门控通道、突触延迟……如果每一步都精确建模,别说仿真一个网络,光是一个细胞就得烧掉整台超算 💥。于是科学家们开始思考:哪些特性是非保留不可的?哪些是可以牺牲的?答案浮出水面:✅必须保留:输入信号的时间累积效应(Integrate)✅必须保留:膜电位不会无限上升,而是会自然衰减(Leaky)✅必须保留:达到某个临界值后突然放电(Fire)而像动作电位的具体形状、复极化过程这些细节?

weixin_33557333的博客 481
上一篇: 动作电位的产生与传导
下一篇: NOR(郎飞氏结):有髓神经纤维的信号中继站
博士熊 - 北邮
博客等级 码龄18年 381粉丝 122原创
评论
成就一亿技术人!
拼手气红包6.0元
还能输入1000个字符
 
 条评论被折叠 查看
添加红包

请填写红包祝福语或标题

个

红包个数最小为10个

元

红包金额最低5元

当前余额3.43元 前往充值 >
需支付:10.00元
成就一亿技术人!
领取后你会自动成为博主和红包主的粉丝 规则
hope_wisdom
发出的红包

打赏作者

博士熊 - 北邮

你的鼓励将是我创作的最大动力

¥1 ¥2 ¥4 ¥6 ¥10 ¥20
扫码支付:¥1
获取中
扫码支付

您的余额不足,请更换扫码支付或充值

打赏作者

实付元
使用余额支付
点击重新获取
扫码支付
钱包余额 0

抵扣说明:

1.余额是钱包充值的虚拟货币,按照1:1的比例进行支付金额的抵扣。
2.余额无法直接购买下载,可以购买VIP、付费专栏及课程。

余额充值